گفتار 2
به سوی پروتئین
اهمیت ژنها در تولید پروتئین
مقدمه
پلیپپتیدها از مهمترین فراوردههای ژنها هستند و پروتئینهای حاصل از آنها نقشهای متنوعی در بدن ایفا میکنند. با این حال، بهجز پلیپپتیدها، انواع مختلفی از رناها نیز بهعنوان فراوردههای ژنی محسوب میشوند.
فراوردههای ژن میتوانند مستقیماً رنا باشند، در حالی که ساخت پلیپپتیدها نیازمند گامهای بعدی مانند ترجمه است.
یاختهها زمانی قادر به ساخت پلیپپتید هستند که ژن، نسخهای از رنای پیک را تولید کرده باشد که اطلاعات لازم برای ترجمه را در خود دارد.
تمام ژنها پلیپپتید تولید نمیکنند، برخی از ژنها فقط دستور ساخت انواع مختلف رنا را در بر دارند.
ژنها و پروتئینهای حاصل از آنها، نقش مهمی در ایجاد صفات دارند.
در علم ژنتیک، به ویژگیهایی که از نسل پیشین به ارث میرسند “صفت” گفته میشود.
ژنها با تولید پروتئینها، ویژگیهای عملکردی و ساختاری جانداران را مشخص میکنند.
تبدیل اطلاعات وراثتی به پروتئین
با استفاده از اطلاعات وراثتی موجود در رنای پیک (mRNA) پروتئین تولید میشود.
این فرایند، ترجمه نام دارد و شامل خواندن کدهای ژنتیکی و تبدیل آنها به زنجیره پلیپپتیدی است.
تبدیل زبان نوکلئیکاسیدی رنا به زبان پلیپپتیدی
فرایند رونویسی و ترجمه
در فرایند رونویسی، از روی توالیهای دنا، رنا ساخته میشود که از نوکلئوتید تشکیل شده است.
در فرایند ترجمه، اطلاعات موجود در رنای پیک (mRNA) به پلیپپتید تبدیل میشود.
دنا و رنا هر دو از نوکلئوتید تشکیل شدهاند، اما پلیپپتیدها از آمینواسید ساخته میشوند؛ بنابراین، لازم است زبان ژنتیکی (نوکلئیکاسیدی) به زبان مولکولی مناسب (آمینواسیدی) ترجمه شود. به ساخته شدن پلیپپتید از روی اطلاعات رنای پیک، ترجمه میگویند.
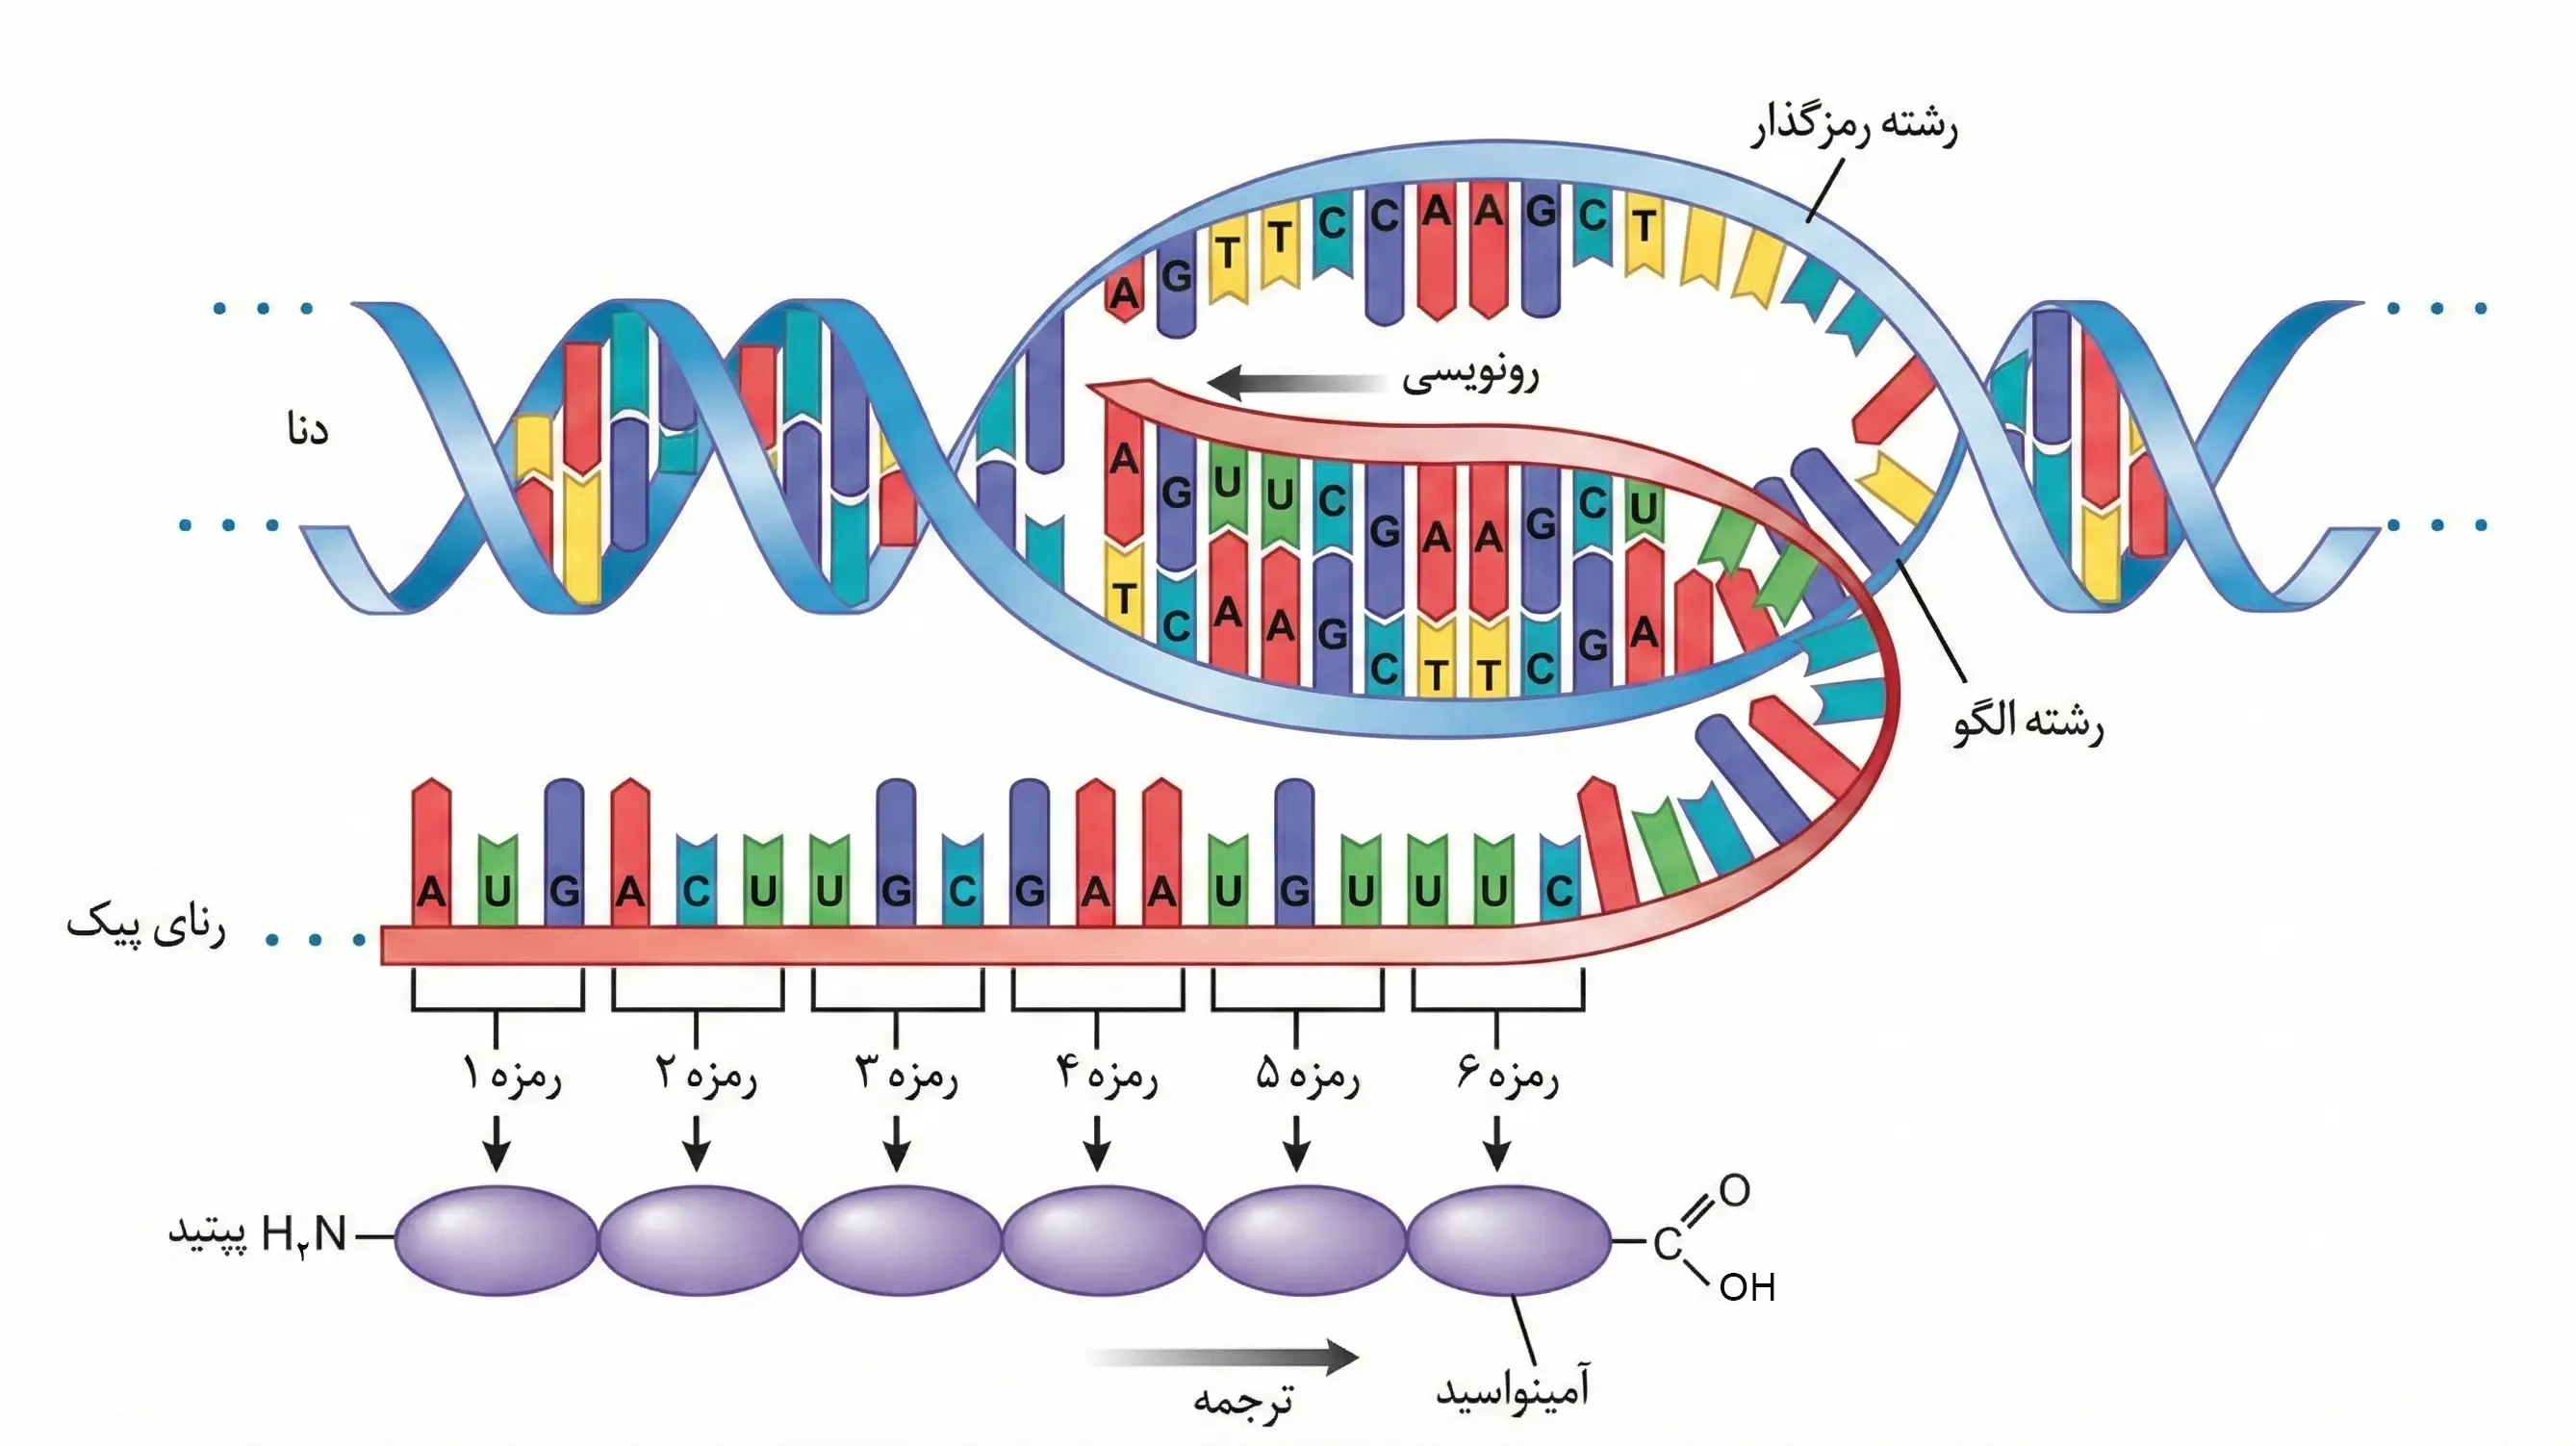
شکل 7 - طرح سادهای از تشکیل شدن پلیپپتید
مقایسه فرایندهای رونویسی و ترجمه
ویژگی | رونویسی | ترجمه |
محصول | رنا | پلیپپتید |
الگو | دنا | رنای پیک (mRNA) |
واحد سازنده | نوکلئوتید | آمینواسید |
زبان | نوکلئیکاسیدی | آمینواسیدی |
رمزهها (کدونها)
رمزهها، توالیهای سه نوکلئوتیدی در رنای پیک هستند که تعیین میکنند کدام آمینواسید در ساختار پلیپپتید قرار گیرد.
به توالیهای سه نوکلئوتیدی در دنا، رمز (کد) و در رنای پیک، رمزه (کدون) گفته میشود.
در یاخته، ۶۴ نوع رمزه وجود دارد که در تمام جانداران یکسان است. این شباهت، نشاندهنده منشأ مشترک جانداران است.
رمزهها شامل ۶۱ رمزه کدکننده آمینواسید و ۳ رمزه پایان هستند که باعث توقف فرایند ترجمه میشوند.
رمزههای خاص
رمزه آغاز
رمزه آغاز یا AUG، رمزهای است که ترجمه از آن آغاز میشود.
این رمزه، معرف آمینواسید متیونین (Met) است.
رمزههای پایان
رمزههای UAA ،UGA و UAG هیچ آمینواسیدی را رمز نمیکنند و موجب توقف فرایند ترجمه میشوند.
هنگامی که رناتن به یکی از این رمزهها در رنای پیک برسد، ترجمه پایان مییابد و پلیپپتید آزاد میشود.
در tRNA، بخشی به نام پادرمزه (آنتیکدون) وجود دارد که با رمزه روی mRNA جفت میشود و آمینواسید مناسب را به رناتن تحویل میدهد. تنها رمزههای پایان، به دلیل نداشتن آمینواسید معادل، فاقد پادرمزهاند.
عوامل لازم در ترجمه
ترجمه نیازمند عوامل مختلفی است. ترجمه را میتوان به یک فرایند آشپزی از روی کتاب آن تشبیه کرد. بر اساس دستوالعمل این کتاب، مواد اولیه به مقدار و ترتیب خاصی استفاده غذای خاصی درست میشود. در ترجمه هم بر اساس رمزههای رنای پیک پلیپپتید خاصی ساخته میشود.
مواد اولیه: آمینواسیدها مواد اولیه مصرفی برای ساخت پلیپپتیدها و پروتئینها هستند.
عوامل ترجمه
رنای پیک (mRNA): حامل اطلاعات ژنتیکی که دستورالعمل ساخت پلیپپتید را فراهم میکند.
رنای ناقل (tRNA):
tRNA مولکولی است که آمینواسیدها را از سیتوپلاسم گرفته و در جای مناسب روی mRNA در رناتن قرار میدهد.
هر tRNA دارای یک پادرمزه (آنتیکدون) است که به رمزههای رنای پیک متصل میشود.
رناتَنها (ریبوزومها):
محل انجام فرایند ترجمه و تشکیل پلیپپتید هستند.
از دو زیرواحد بزرگ و کوچک تشکیل شدهاند.
زیرواحد کوچک، رنای پیک را شناسایی میکند.
زیرواحد بزرگ، به رناهای ناقل متصل شده و زنجیره پلیپپتیدی را تشکیل میدهد.
دستورالعمل ساخت: بر اساس رمزههای رنای پیک، پلیپپتیدهای خاصی ساخته میشوند.
منابع انرژی: انجام ترجمه به انرژی نیاز دارد، که معمولاً از طریق تجزیه ATP فراهم میشود.
عوامل کلیدی موثر در فرآیند ترجمه
عامل | نقش اصلی | ویژگیهای ساختاری/عملیاتی |
رنای پیک (mRNA) | حمل اطلاعات ژنتیکی | حاوی دستورالعمل ساخت پلیپپتید |
رنای ناقل (tRNA) | انتقال آمینواسید | دارای پادرمزه (آنتیکدون) برای اتصال به mRNA |
رناتَنها (ریبوزومها) | مرکز فرآیند ترجمه | شامل دو زیرواحد (کوچک و بزرگ)؛ هر کدام وظیفه خاصی دارند. |
ساختار رنای ناقل
تغییرات و ساختار نهایی رنای ناقل
پس از رونویسی، رنای ناقل دستخوش تغییراتی میشود که منجر به شکلگیری ساختار نهایی و فعال آن (ساختار الف) خواهد شد:
رونویسی: رنای ناقل در پروکاریوتها توسط رنابسپاراز پروکاریوتی و در یوکاریوتها توسط رنابسپاراز ۳ ساخته میشود.
تغییرات پس از رونویسی:
tRNA تازه رونویسیشده در یوکاریوتها با شکل نهایی موجود در سیتوپلاسم تفاوت دارد، زیرا پس از رونویسی تغییر میکند.
این تغییرات در پروکاریوتها نیز مشاهده میشود.
پیوندهای هیدروژنی: برخی نوکلئوتیدهای مکمل در رشته رنای ناقل با یکدیگر پیوند هیدروژنی ایجاد میکنند.
تاخوردگی:
ساختار اولیه: tRNA ابتدا بهصورت تکرشتهای و بدون تاخوردگی ساخته میشود.
تاخوردگی اولیه: در این مرحله، tRNA با ایجاد پیوندهای داخلی (هیدروژنی) بین بازهای مکمل، خم میشود و نواحی دورشتهای شکل میگیرد.
ساختار سهبعدی: در نتیجه تاخوردگیهای مجددی، ساختار نهایی و سهبعدی رنای ناقل شکل میگیرد.
نکته: برخلاف DNA که پیوندهای مکمل بین دو رشته مقابل شکل میگیرد، در tRNA این پیوندها درون یک رشته و میان بخشهای مختلف آن ایجاد میشوند.
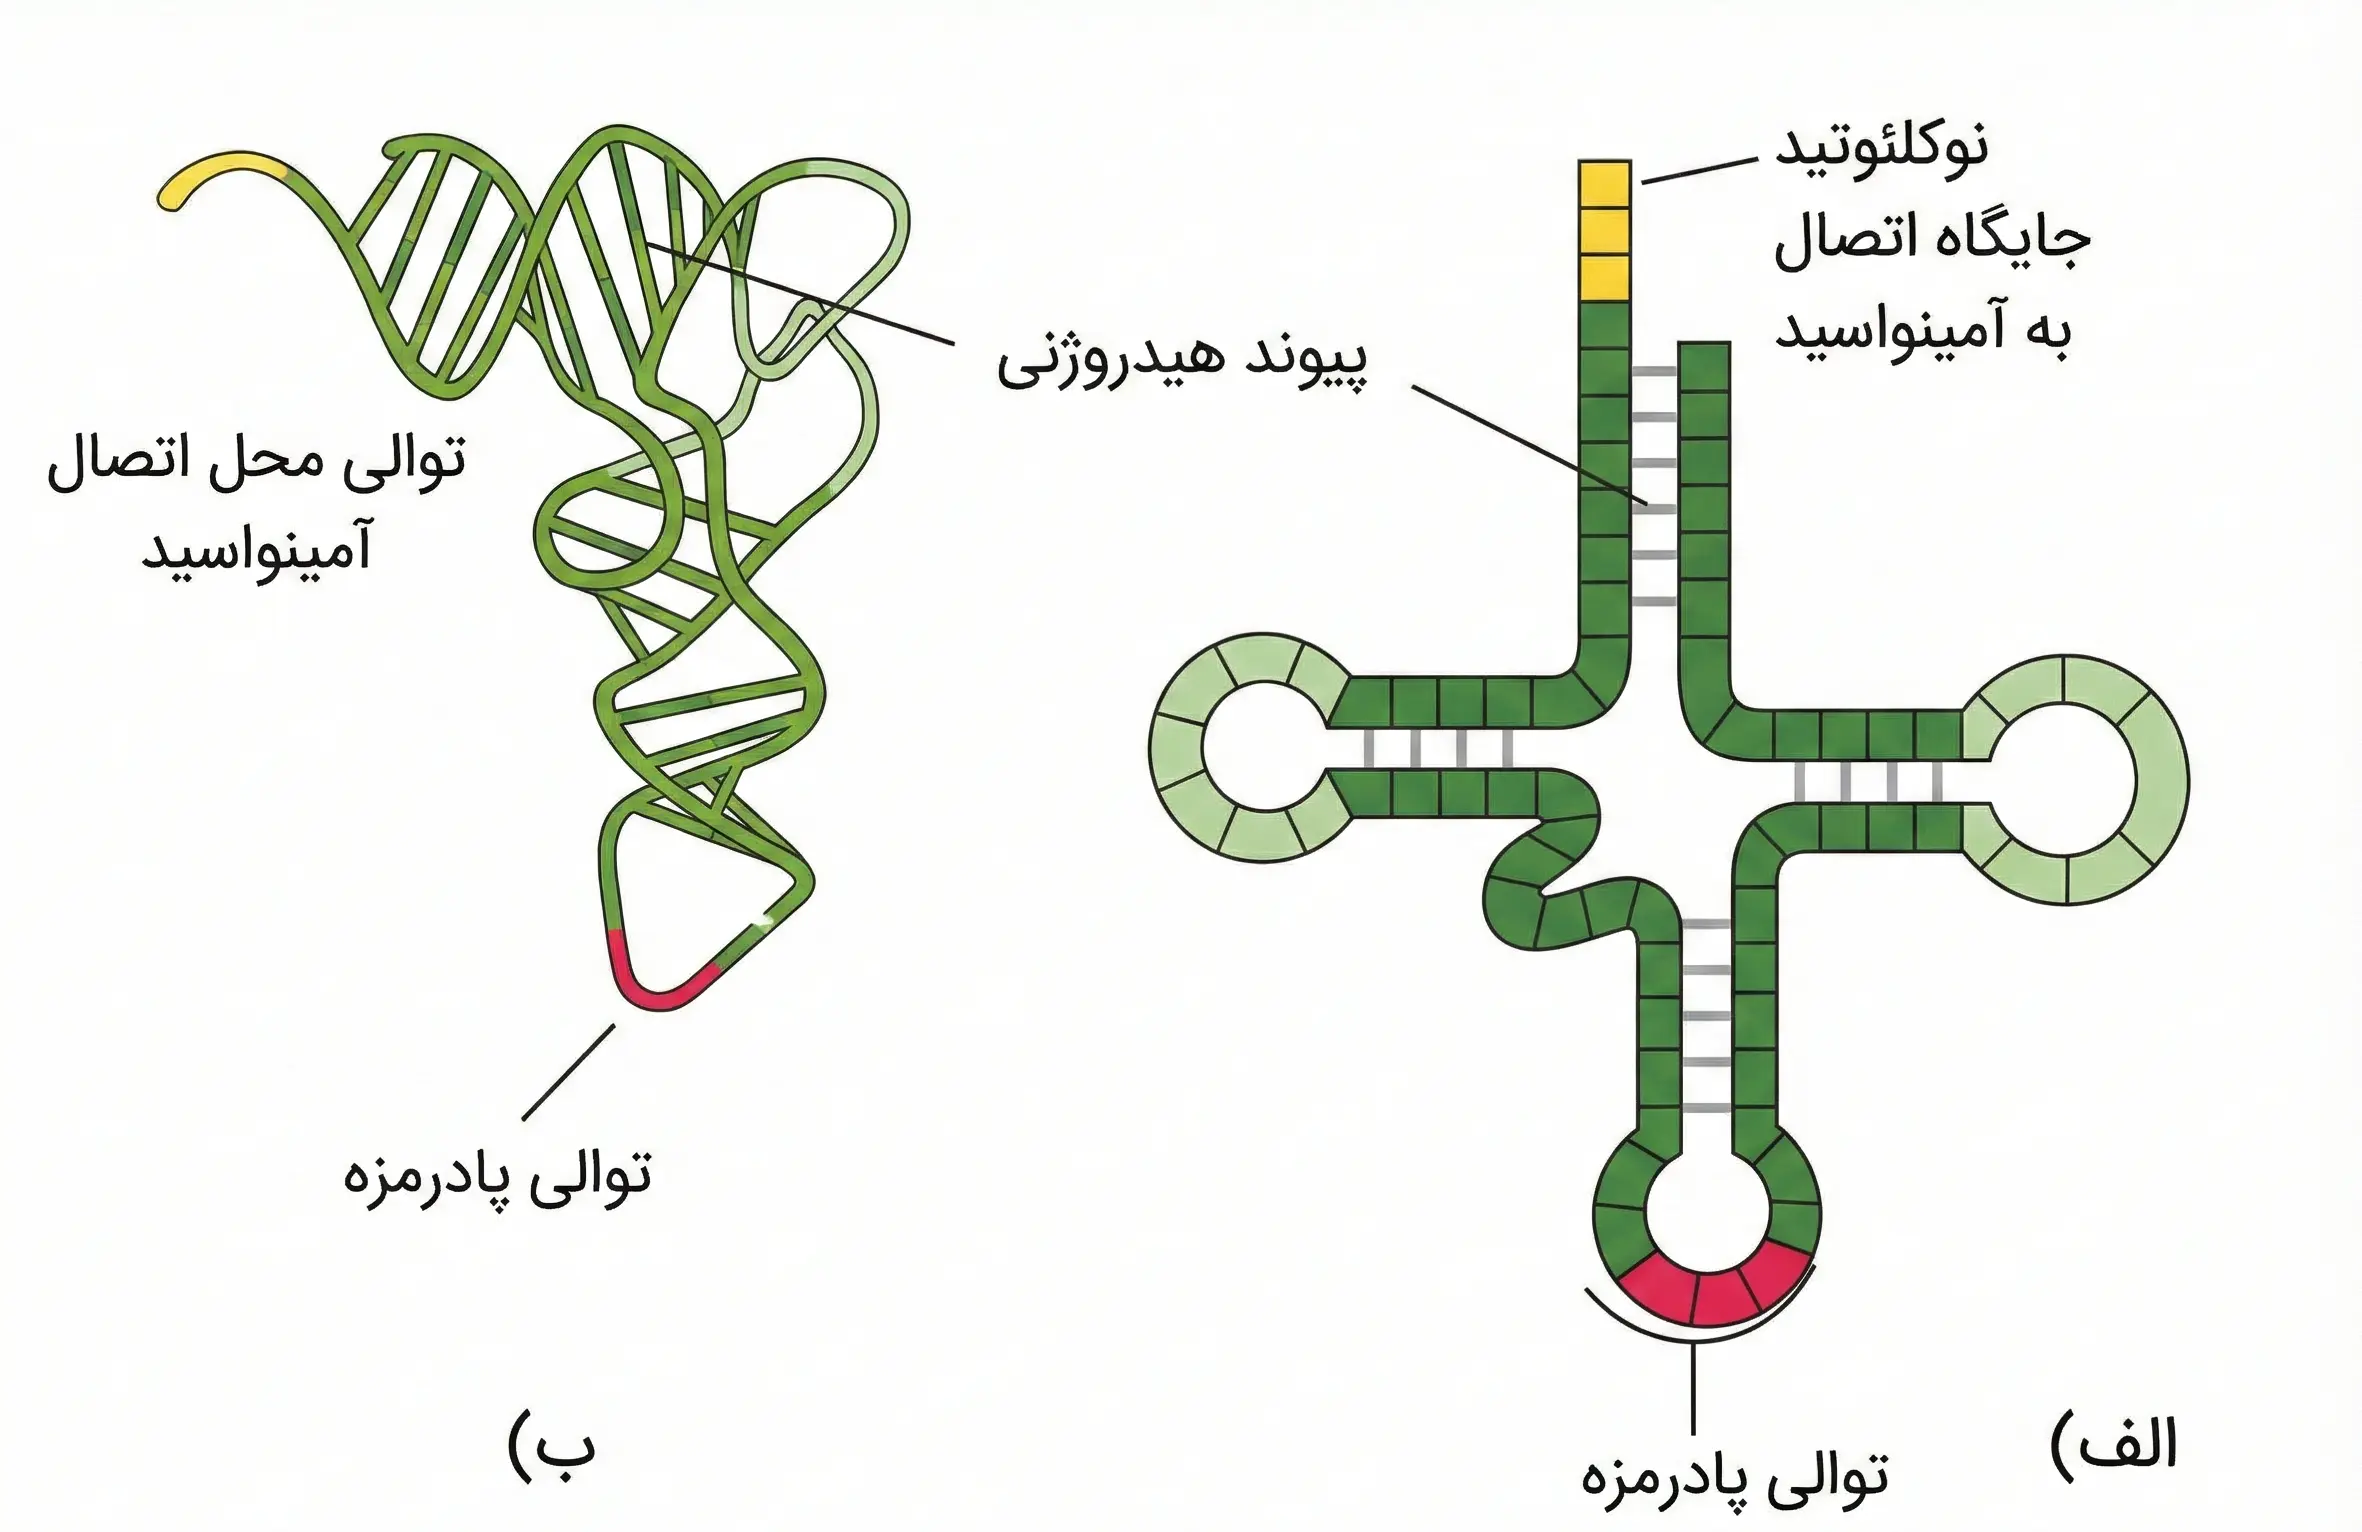
شکل 8 - ساختار رنای ناقل الف) تاخوردگی اولیه ب) ساختار سهبعدی
بخشهای اصلی رنای ناقل
محل اتصال آمینواسید: جایی که آمینواسید مشخصی به رنای ناقل متصل میشود.
پادرمزه (آنتیکدون):
توالی سه نوکلئوتیدی که مکمل رمزه (کدون) در رنای پیک (mRNA) است.
دلیل نامگذاری: هنگام ترجمه، پادرمزه با رمزهی مکمل خود پیوند هیدروژنی برقرار میکند.
اگرچه جایگاه اتصال آمینواسید در همه tRNAها مشابه است، اما ناحیه پادرمزهای هر tRNA اختصاصی بوده و متفاوت از بقیه است.
ویژگیهای ساختاری:
در همه رناهای ناقل، به جز در ناحیه پادرمزهای، انواع توالیهای مشابهی وجود دارند و جایگاه اتصال به آمینواسید در همه رناهای ناقل دارای توالی یکسانی است.
پادرمزه هر نوع رنای ناقل، منحصر به فرد است.
هنگام ترجمه، توالی پادرمزه با رمزهی مکمل خود پیوند هیدروژنی مناسب برقرار میکند.
تعداد پادرمزهها و مقایسه با رمزهها
برخلاف انتظار، تعداد پادرمزهها کمتر از تعداد رمزهها است.
برای رمزههای پایان (UAA ،UGA ،UAG)، هیچ رنای ناقلی وجود ندارد.
مقایسهی تعداد رمز، رمزه و پادرمزه:
رمز (کد) در دنا: ۶۴ نوع
رمزه (کدون) در رنای پیک: برابر با رمزهای دنا، یعنی ۶۴ رمزه
پادرمزه (آنتیکدون) در رنای ناقل:
فقط برای رمزههای کدکنندهی آمینواسیدها پادرمزه و رنای ناقل وجود دارد.
برای رمزههای پایان ترجمه، پادرمزه و رنای ناقل وجود ندارد.
در مجموع، ۶۱ نوع رنای ناقل در یاخته وجود دارد.
آمینواسیدها: در ساختار پروتئینها فقط از ۲۰ نوع آمینواسید استفاده میشود.
نوکلئوتیدها: 4 نوع نوکلئوتید در دنا و ۴ نوع نوکلئوتید در رنا وجود دارد، یعنی مجموعاً ۸ نوع نوکلئوتید در ساختار نوکلئیکاسیدها دیده میشود.
بازهای آلی: 5 نوع باز آلی نیتروژندار در یاختهها وجود دارد.
در یاختهها، تعداد رمزهای DNA و رمزههای mRNA هر دو ۶۴ است، اما فقط ۶۱ tRNA وجود دارد که برای ۲۰ نوع آمینواسید کد میدهند، در حالی که نوکلئیکاسیدها تنها از ۴ نوع نوکلئوتید تشکیل شدهاند که دارای ۴ باز نیتروژنیاند.
اتصال آمینواسید به رنای ناقل
هر نوع آمینواسید به هر نوع رنای ناقل متصل نمیشود.
توالی پادرمزه (آنتیکدون) مشخص میکند که کدام آمینواسید به رنای ناقل متصل شود.
با وجود ۶۱ نوع رنای ناقل، تنها ۲۰ آمینواسید در ساختار پروتئینها استفاده میشود. بنابراین ممکن است چند نوع tRNA مختلف، آمینواسید مشابهی را انتقال دهند.
امکان دارد tRNAهایی با پادرمزههای گوناگون، یک آمینواسید خاص را به رناتن تحویل دهند.
این تنوع در رناهای ناقل به یاخته امکان میدهد که با وجود محدودیت تعداد انواع tRNA، بتواند تمام آمینواسیدهای مورد نیاز برای ترجمه را تأمین کند.
بهعنوان یک مثال خاص، رنای ناقل حامل متیونین، دارای پادرمزه UAC است که مکمل رمزه AUG میباشد.
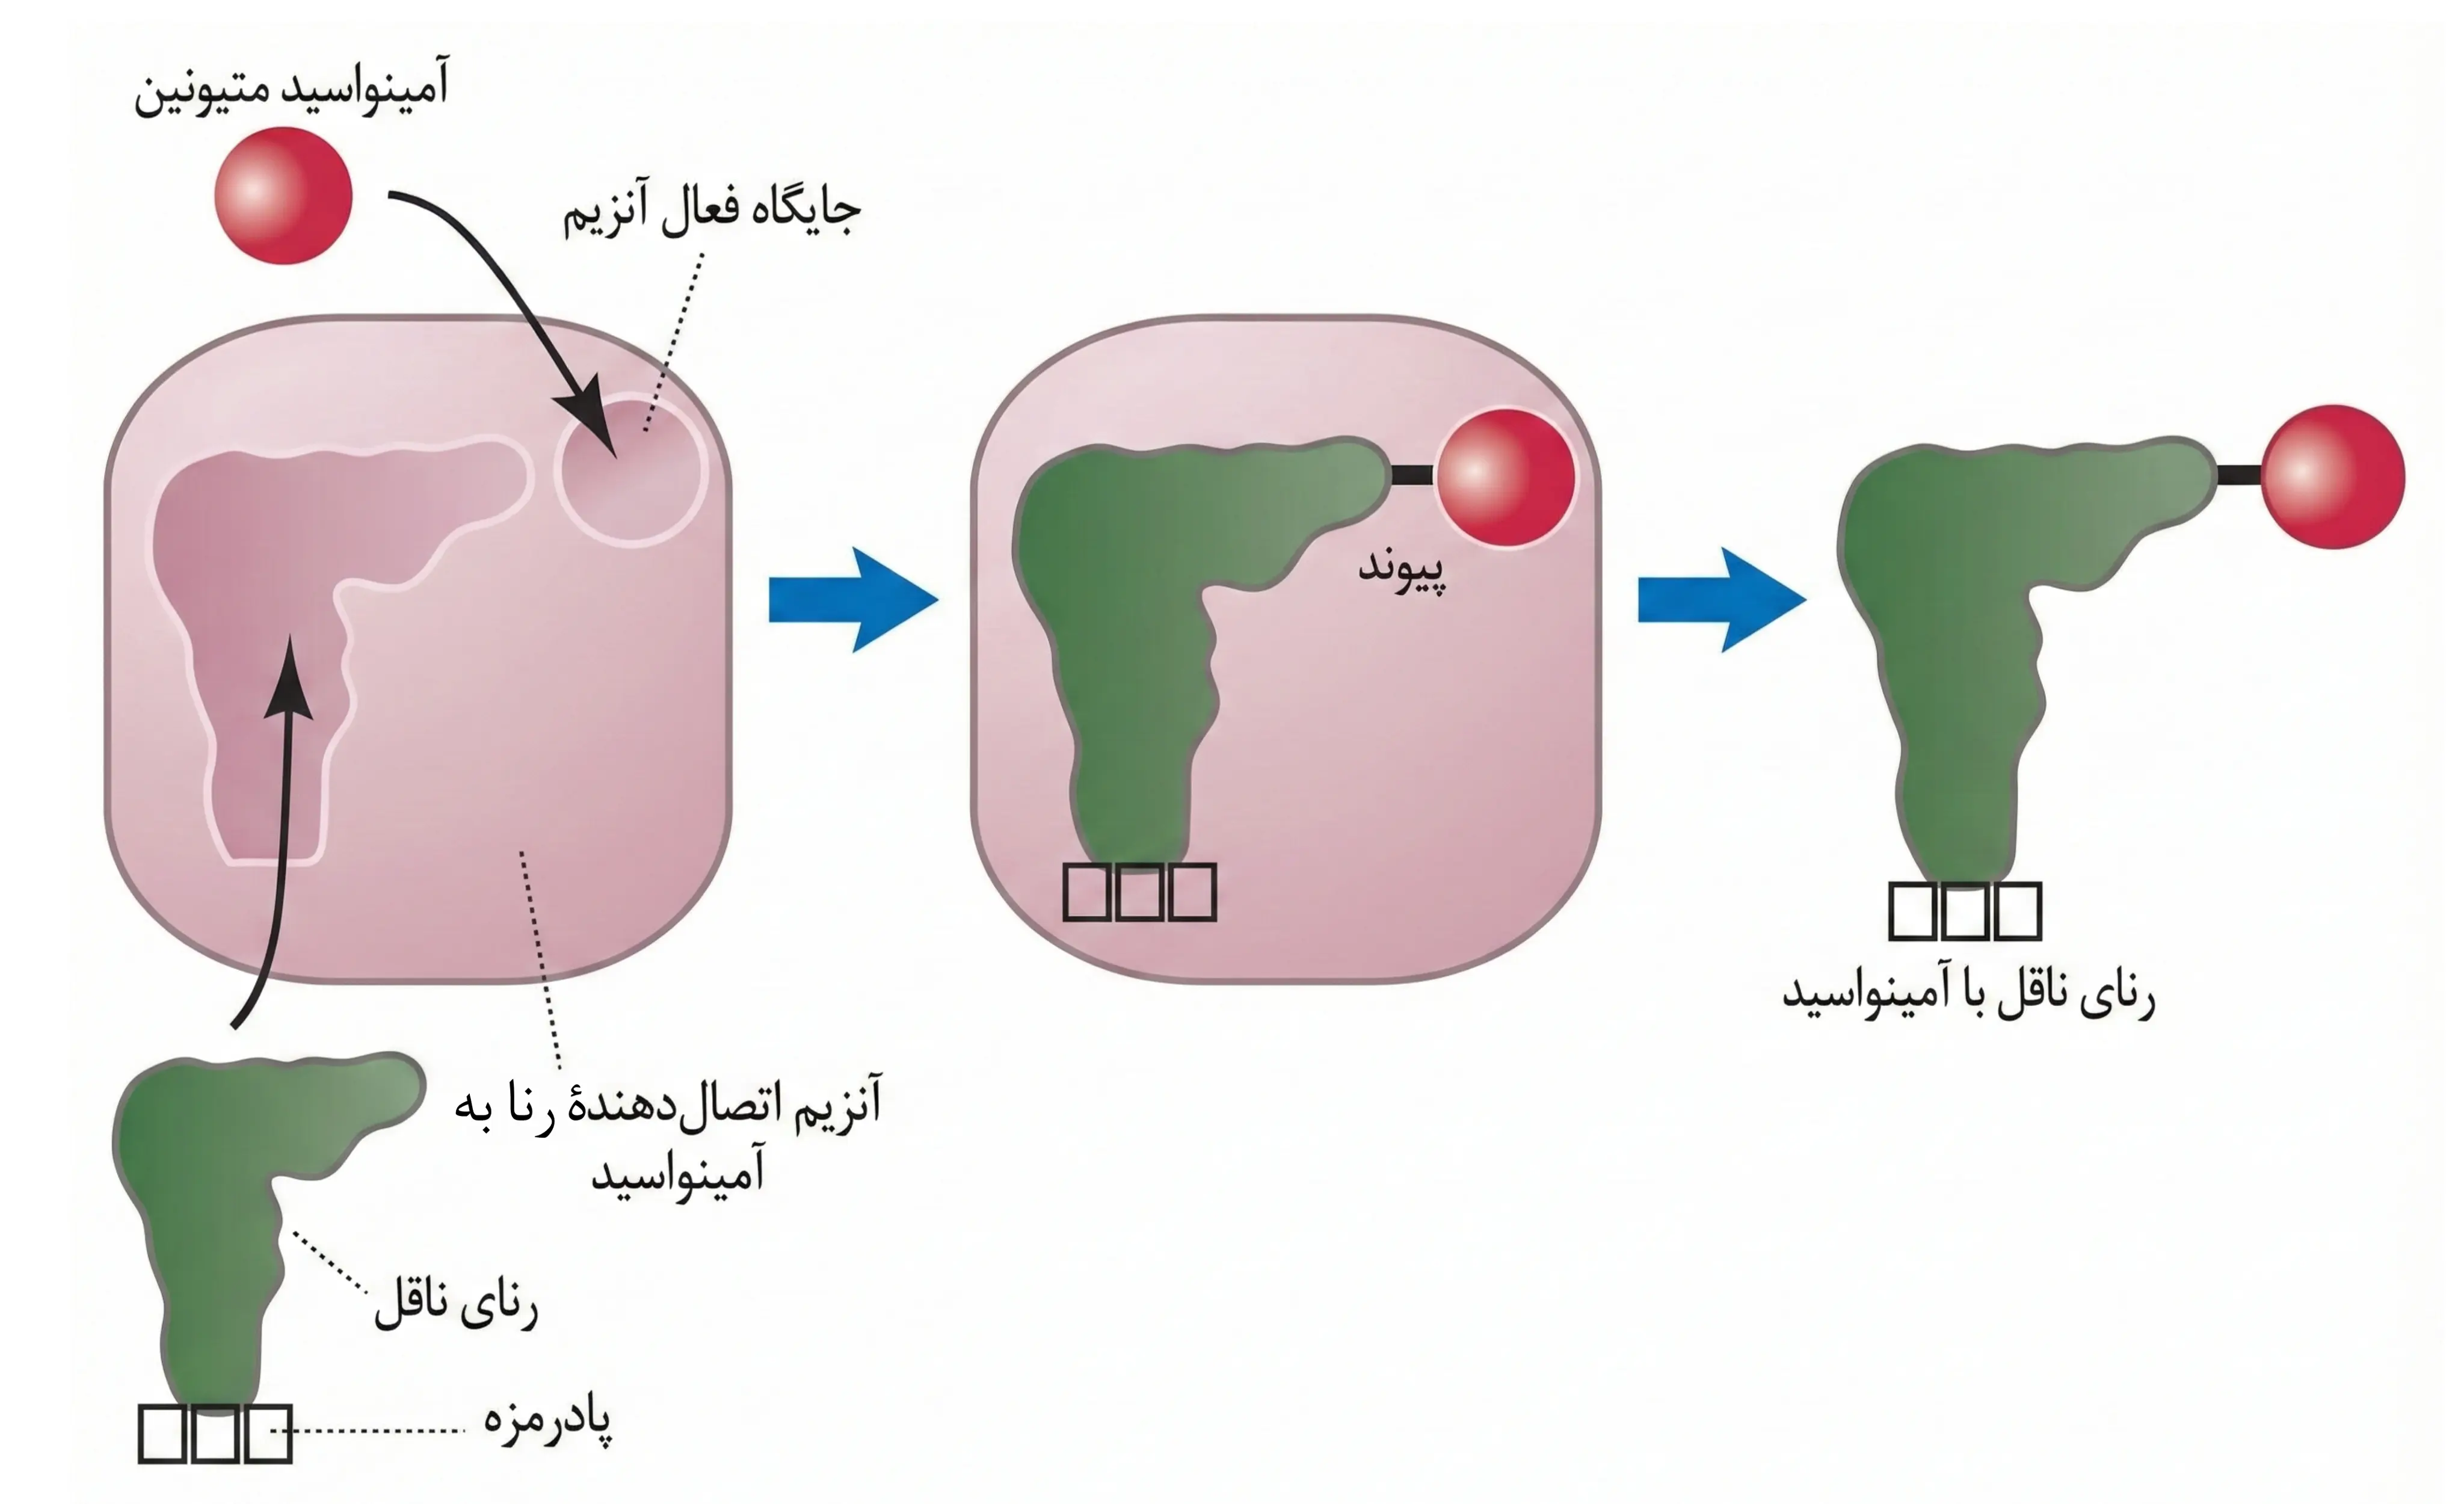
شکل 9 - نحوۀ پیوستن آمینواسید به رنای ناقل مربوط به خود توسط آنزیم ویژه آن
نقش آنزیمهای ویژه در اتصال آمینواسید به رنای ناقل
در یاخته، آنزیمهای ویژهای وجود دارند که آمینواسید مناسب را بر اساس نوع توالی پادرمزه، به رنای ناقل متصل میکنند.
مراحل اتصال آمینواسید به رنای ناقل توسط آنزیم ویژه:
رنای ناقل در جایگاه مشخصی از آنزیم ویژه قرار میگیرد.
آنزیم، توالی پادرمزه را در رنای ناقل تشخیص میدهد.
بر اساس نوع توالی پادرمزه، آنزیم، آمینواسید مناسب را انتخاب میکند.
آمینواسید در جایگاه فعال آنزیم ویژه قرار میگیرد. اما رنای ناقل در این جایگاه قرار نمیگیرد.
برای اتصال آمینواسید به رنای ناقل، آنزیم انرژی مصرف میکند.
آمینواسید، به نوکلئوتید جایگاه اتصال آمینو اسید در رنای ناقل متصل میشود.
پس از اتصال آمینواسید، رنای ناقل دارای آمینو اسید از آنزیم جدا شده و آماده شرکت در ترجمه میشود.
اتصال صحیح آمینواسید به رنای ناقل از اهمیت بالایی برخوردار است، زیرا در غیر این صورت، خطا در ترجمه رخ خواهد داد.
نکات تکمیلی:
در آغاز فرایند ترجمه، رمزهای نظیر AUG در رنای پیک آغازگر رمزگذاری متیونین تلقی میشود.
رنای ناقل که متیونین را منتقل میکند، دارای پادرمزهای است که با رمزهی AUG مکمل است؛ این پادرمزه معمولاً UAC میباشد.
فرایند شناسایی رمزه و پادرمزه در ترجمه نقش کلیدی دارد و تضمین میکند که هر آمینواسید در موقعیت صحیح خود در زنجیره پلیپپتیدی قرار بگیرد.
خطا در اتصال آمینواسید به رنای ناقل میتواند منجر به ساخت پروتئینهای غیرعملکردی شود که ممکن است بر عملکرد یاختهای تأثیر منفی بگذارد.
ساختار رناتن
اجزای رناتن
دانستید که رناتن در ساخت پلیپپتید نقش دارد. رِناتَن (ریبوزوم) از دو بخش اصلی (زیرواحد) تشکیل شده که به آنها زیرواحدهای بزرگ و کوچک گفته میشود.
هر زیرواحد از دو نوع مولکول تشکیل شده است:
رنا از نوع رنای رناتَنی (rRNA)
پروتئینهای رناتَنی
رنای رناتَنی (rRNA) در پروکاریوتها توسط رنابسپاراز پروکاریوتی و در یوکاریوتها توسط رنابسپاراز 1 ساخته میشود.
نحوه تشکیل رناتن
پس از ساخته شدن پروتئینهای رناتَنی و رنای رناتَنی، این مولکولها در کنار هم قرار گرفته و زیرواحدهای کوچک و بزرگ رناتَن را تشکیل میدهند.
در پروکاریوتها، تشکیل زیرواحدهای رناتنی در سیتوپلاسم انجام میشود، اما در یوکاریوتها این فرایند در هستک رخ میدهد.
تا قبل از شروع ترجمه و زمانی که رناتَن فعالیتی ندارد، زیرواحدهای کوچک و بزرگ آن از هم جدا هستند.
در مرحله آغاز ترجمه، این زیرواحدها در کنار یکدیگر قرار میگیرند و ساختار کامل رناتَن را تشکیل میدهند.
در یوکاریوتها، پس از تشکیل زیرواحدهای رناتنی در هستک، این زیرواحدها به سیتوپلاسم منتقل میشوند تا در ترجمه شرکت کنند.
جایگاههای رناتن
رِناتَن در ساختار کامل خود دارای سه جایگاه اصلی است:
جایگاه A: محل ورود رنای ناقل حامل آمینواسید.
جایگاه P: محل قرارگیری رنای ناقل دارای زنجیره پلیپپتیدی.
جایگاه E: محل خروج رنای ناقل بدون آمینواسید.
زیرواحدهای رناتن در کنار یکدیگر عمل میکنند تا محلهای اتصال tRNA را شکل دهند، ولی بیشتر این ساختارها توسط زیرواحد بزرگ ساخته میشوند.
رناتنها زمانی به شکل کامل درمیآیند که مرحلهی ترجمه آغاز شود.
ساختار جایگاههای رناتنی در پروکاریوتها و یوکاریوتها مشابه است.
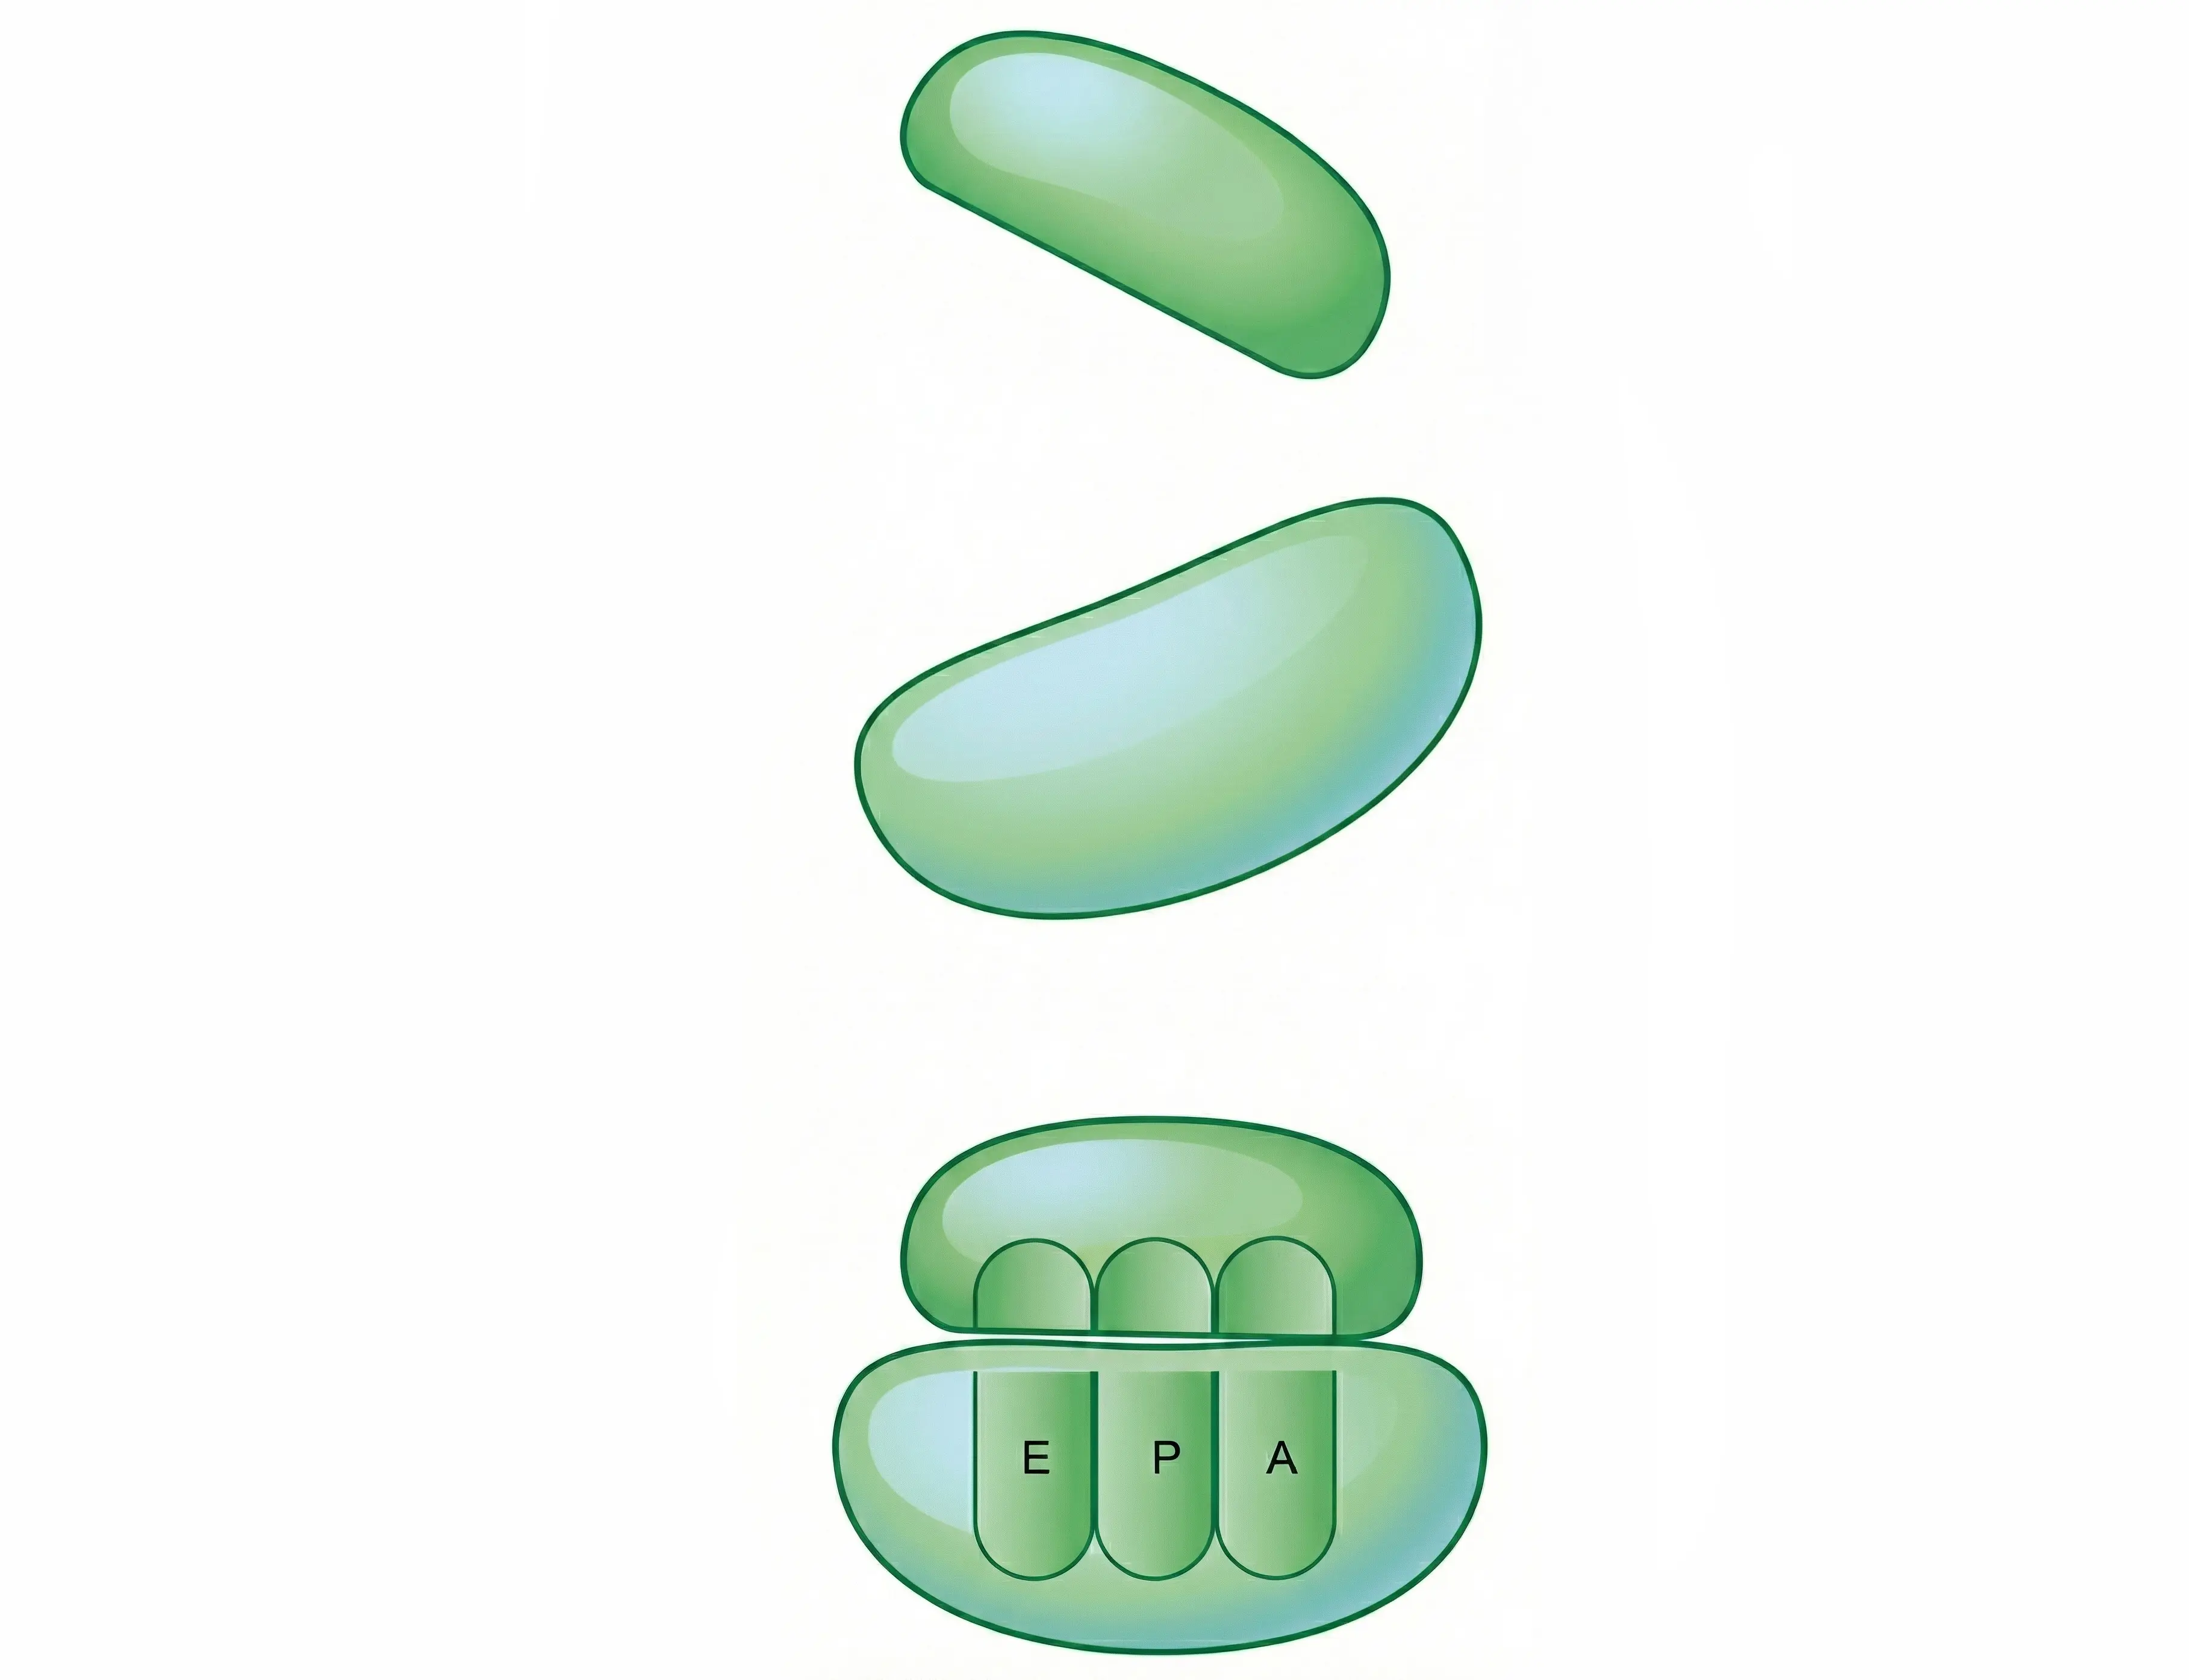
شکل 10 - ترتیب قرارگیری زیرواحدهای رِناتَن